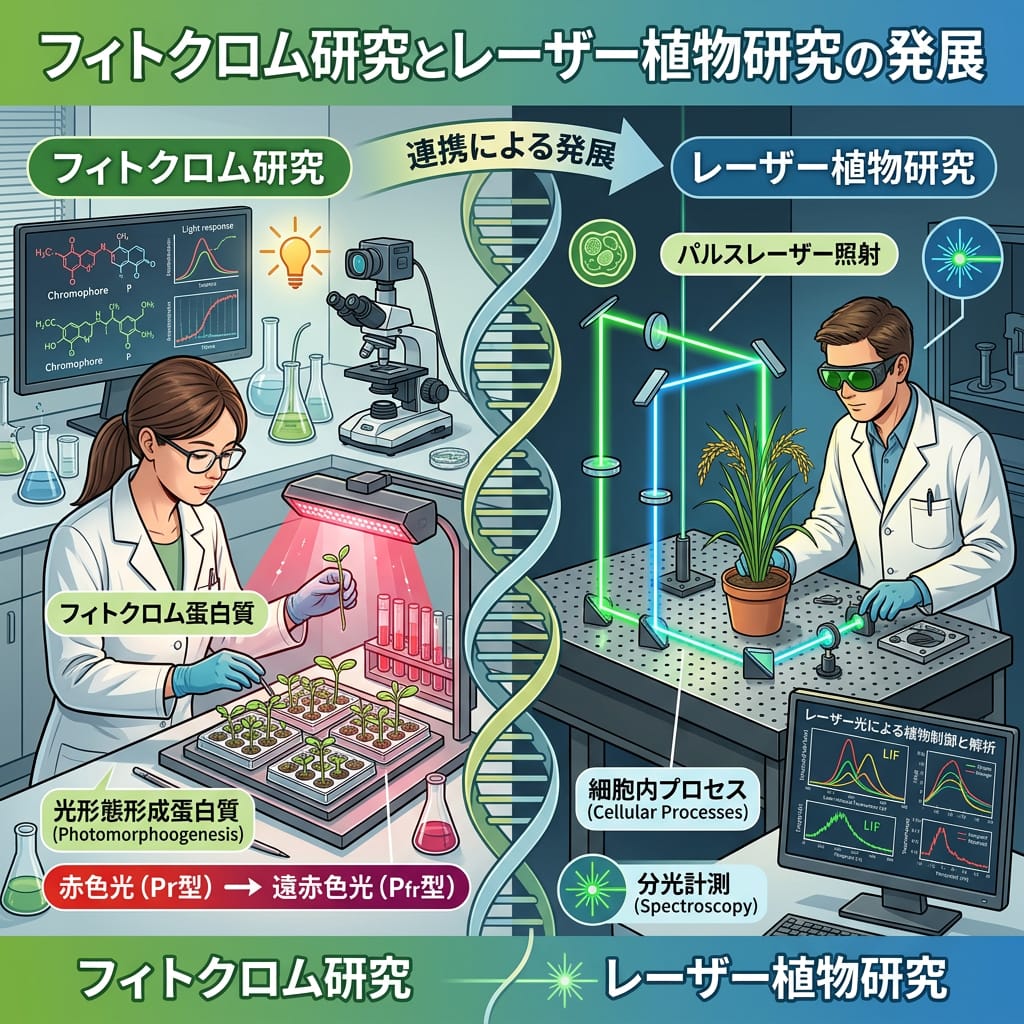
時系列で見る研究の流れ
① 植物生理学の発見(1950年代〜)
赤色光(R)によって発芽が促進され、
遠赤色光(FR)によってその効果が打ち消されることが発見された。
赤色光(R)
      ↓
   発芽促進

遠赤色光(FR)
      ↓
   発芽抑制
この研究からフィトクロム(Phytochrome)が発見され、
Pr(不活性型)
      ⇄
Pfr(活性型)
として働く天然の光スイッチであることが理解された。
② phyBの重要性の解明(1990年代〜)
シロイヌナズナを用いた遺伝学研究によって、
- phyA
- phyB
- phyC
- phyD
- phyE
の5種類のフィトクロムが存在することが判明した。
その中でも phyB が、
- 発芽
- 光形態形成(Photomorphogenesis)
を制御する中心的な光受容体であることが明らかになった。
③ 分光学による超高速解析(1990〜2020年代)
光吸収
   ↓
100 fs
励起状態形成

   ↓
10〜30 ps
Lumi-R形成

   ↓
μs〜ms
Meta-R形成

   ↓
ms〜s
Pfr形成

   ↓
シグナル伝達

   ↓
発芽・成長応答
しかし、これらの研究は主に
- 精製タンパク質
- 抽出試料
を用いて行われていた。
④ 短パルス光研究の発展
数分の赤色光
      ↓
 発芽誘導

ミリ秒パルス
      ↓
 発芽誘導

ナノ秒レーザー
      ↓
 発芽誘導
フィトクロムは極めて短い光刺激も利用できることが示された。
⑤ レーザー農学研究の発展(1970年代〜)
連続レーザー照射
         ↓
発芽促進

成長促進

種子活性化
⑥ 未解決問題
フェムト秒パルス
(10^-15 秒)
未解決の疑問:
- 本当に植物は認識できるのか?
- フィトクロムが直接受容するのか?
- 発芽を誘導できるのか?
- 赤色⇄遠赤色スイッチは維持されるのか?
- どのフィトクロムが関与するのか?
⑦ 本研究(2025)
光照射
   ↓
シロイヌナズナ種子

   ↓
発芽率測定

   ↓
胚軸長測定

   ↓
phyB変異体解析
主な結果
✅ フェムト秒光でも発芽誘導可能
✅ 赤色光で促進、遠赤色光で抑制
✅ フィトクロム型の可逆的スイッチが成立
✅ phyBが主要受容体
✅ 胚軸伸長も制御
✅ 長期的な悪影響なし
研究全体の流れ(まとめ)
植物生理学
      ↓
フィトクロム発見
      ↓
phyBの同定
      ↓
超高速分光研究
      ↓
短パルス光研究
      ↓
レーザー植物研究
      ↓
未解決問題
(フェムト秒光は植物に認識されるのか?)
      ↓
本研究
      ↓
phyBによる発芽・光形態形成を実証
フォトスイッチ研究との関係
人工フォトスイッチ
(Diarylethene)

フェムト秒異性化
      ↓
機能発現

天然フォトスイッチ
(Phytochrome B)

フェムト秒異性化
      ↓
発芽・光形態形成